Текст книги "Клеймо создателя. Гипотеза происхождения жизни на Земле"
Автор книги: Феликс Филатов
Жанр:
Биология
сообщить о нарушении
Текущая страница: 6 (всего у книги 12 страниц) [доступный отрывок для чтения: 6 страниц]
Продукты чисто химического синтеза тех и других всегда представляют собой рацематы, то есть смеси равных количеств лево– и правовращающих молекул, энантиомеров (оптически активных изомеров, вращающих плоскость поляризации влево или вправо). Продукты же их биологического синтеза гомохиральны – иначе структуры их полимеров будут произвольно нарушены, что приведет к безусловной утрате необходимых функций. Больше того, поскольку продукты реакции право– и левовращающихэнантиомеров исключительно с правовращающим веществом не являются зеркальным отражением друг друга, они имеют разные физические свойства, например, растворимость в воде, и значит, они могут быть отделены друг от друга. Другими словами, оптически неактивные реактивы производят оптически неактивные продукты – вследствие работы законов термодинамики. Для разрешения рацемата (то есть для разделения энантиомеров) в реакцию должно быть введено другое гомохиральное вещество.
Происхождение гомохиральностинеясно. Вероятность самостоятельного образования одного гомохирального полимера ничтожна; еще – и гораздо – ниже вероятность образования гомохирального полимера с определенной функциональной активностью. В принципе это означает, что процессы полимеризации, матричного копирования полимеров и формирования гомохиральности происходили одновременно и взаимосвязано, для чего потребовались весьма специфические – и в полном объеме пока неизвестные – условия, часть которых (в терминах мегамасштабных «естественных привилегий») описана выше. Таким образом, первые две из трех Великих Молекулярных Революций , приведших к возникновению жизни (1. Хиральность – 2. Генетический Код – 3. Клетка), совпадала по времени с двумя Большими Скачками , MajorTransitions , как их назвали Мэньярд Смит и Эорс Шатмари[46]:
– возникновение генов (в рамках чего формировались машины полимеризации нуклеиновых кислот и машины копирования матриц) и
– возникновение белков (в рамках чего формировались машины полимеризации белков и самое нуклеино-белковое кодирование).
Эти процессы должны были иметь планетарный масштаб: жизнь вряд ли возникла в одной лужице (или у единственного глубоководного термального источника), распространяясь затем по всей Земле и преодолевая «враждебное окружение». Скорее всего, сходные события имели место во многих местах, после чего – при соприкосновении друг с другом – они в некоторых случаях конкурировали, в других кооперировались в общую систему. Более того, эти процессы можно уже связывать с жизнью, поскольку гомохиральныене-биологические вещества рацемизируются со временем. «Неживая» химия обсуждаемых процессов имеет тенденцию к равновесию (то есть к смерти, а не к жизни).
Предложены самые различные гипотезы естественного возникновения гомохиральности биологических макромолекул, основанные на некотором нарушении равновесия энантиомеров в рацемате, обусловленном, например, их круговым дихроизмом, то есть неравным поглощении фотонов света правыми и левыми энантиомерами с последующим отбором, – или бета-распадом, который управляется слабым ядерным взаимодействием, обладающем небольшой хиральностью, называемой несохранением четности, – или самоотбором, который наблюдал еще Пастер, – или сильным магнитным полем и т.п. Ни одна из них не убеждает оппонентов, ни одна из нихне являетсявполне удовлетворительной для объяснения обсуждаемого феномена, который продолжает выглядеть счастливой случайностью. Невольно отмечаешь, что возникновение «молекул жизни» (гомохиральных, разумеется) привязано в этих гипотезах к поверхности планеты (гипотеза Опарина) или к ее атмосфере (гипотеза, проверке которой был посвящен эксперимент Миллера-Юри). Между тем, быстрота, с какой на Земле возникла жизнь (практически сразу после образования планеты), наводит и на другие предположения.
Так называемые «плотные молекулярные облака» в космосе – это, по земным меркам, сверхглубокий вакуум. Тем не менее, втаких облаках есть имолекулы, иорганическиевещества, ивозможность химических реакций. Виталий Гольданский предположил, что первичный органический синтез происходил именно в молекулярных облаках. По гипотезе Сванте Аррениуса, органическое веществовыпало на Земле вготовом виде. Объединенная гипотеза Аррениуса-Гольданского, тем не менее, также не выглядит удовлетворительной: химический синтез в молекулярных облаках, скорость которого чрезвычайно низка, не компенсирует разрушения продукта в условиях космоса. В то же время частички таких облаков чрезвычайно малы, и это открывает возможность для молекулярных флуктуаций.
Весьма любопытную гипотезу выдвинули Валерий Снытников и Валентин Пармон (http://evolution.powernet.ru/library/lifecreate.htm). Они предположили, что самоорганизация яляется таким механизмом воздействия протозвезды на свое окружение, который приводит к формированию одновременно и планет, и универсального природного каталитического реактора, в котором синтезируется органическое вещество. Это предположение авторы отслеживали в разработанных ими математических моделях. В основе самоорганизации лежит развитие коллективной неустойчивости, взаимодействие множества малых тел самого различного масштаба – от молекул до астероидов. Когда совокупная масса твердых тел в газе (т.е. в молекулярном облаке) начинает превышать определенную величину, коллективная неустойчивость движения этих тел и газа приводит к образованию разнообразных динамических структур (колец, спиралей, дисков, шаров и т.п.). Общая масса эта, концентрирующаяся вокруг протозвезды, увеличивается благодаря вращению всей системы, а локальное увеличение масс твердых тел происходит за счет слипания в газе вязких и рыхлых тел. Так происходит образование твердых катализаторов, содержащих в необходимой комбинации железо, кремний, никель в их природной распространенности. Поскольку в околозвездном облаке нет недостатка в субстратах катализа (окись углерода, водород и др.), начинают образовываться все более сложные органические молекулы . Все эти процессы радикально меняют характер неустойчивости. На фоне общей плотности появляются относительно стабильные сгустки вещества. Эти сгустки могут двигаться в самом произвольном направлении – подобно солитонам, одиночным волнам плотности. Оказалось, что давление газа в такой волне приближается к атмосферному земному, на два – и более – порядка превышая окружающее. Эта волна действует как саморегенерируемый (за счет протозвезды) каталитический реактор, температура которого остается более или менее постоянной – в силу охлаждения гелием, также сконцентрированным в этом сгустке (именно в таких условиях, считают авторы, и следует изучать синтез первичного органического вещества; они очень отличаются от условий обычных «земных» реакций типа эксперимента Юри-Миллера). Потенциально – как показывает моделирование – «космические солитоны» могут и разрушиться, но иногда они становятся"центрами кристаллизации" планет. При этом, двигаясь вокруг звезды, косимческий"солитон" теряет легкие составляющие – под действием солнечного ветра и деструктивного излучения. Далекие внешние планеты сохраняют первичные газы (и должны сохранять также первичную простую органику?). Более близкие к формирующемуся Солнцу «сгустки» собираются в планету, обогащенную тяжелыми и сложными органическими соединениями, которые могут служить субстратом для возникновения жизни (если она уже не зародилась – вместе с формированием хиральной чистоты молекул – до того, как сгусток приобрел вид первичной планеты). Образование планет из околозвездного облака в гравитационной физике детерминировано. Однако, место этого образования случайно. Там, где вода может находиться во всех трех фазовых состояниях – твердом, жидком и газообразном, – условия для возникновения жизни наиболее благоприятны.
Информация о том, как развивалась и что представляет собой наша Вселенная накапливается стремительно и так же стремительно обогащает наши представления о происхождении жизни. В одном только в 2009 году была сделана серия весьма крупных открытий. Самые громкие из них – открытие запасов воды на Луне, открытие абиогенного метана на Марсе, открытие на спутнике Сатурна Титане озер жидких углеводородов с сезонными движениями из полушария в полушарие, открытие там же так называемых криовулканов , которые извергают жидкую воду вместо магмы. За пределами Солнечной системы – это открытие все более легких планет, «суперземель», масса которых приближается к земной, а некоторые состоят из горных пород; открытие, вероятно, нового типа сверхновых (на слух астронома, новая сверхновая – никакой не каламбур) – небольшой массы и с некоторыми аномалиями содержания элементов. Каждая из этих находок может самым существенным образом изменить мир, каким мы видим его сегодня.
Однажды достигнутая – в результате первой Великой Молекулярной Революции – хиральная чистота, совершенно необходимая для надежной работы машин матричного копирования, должна была немедленно закрепиться в составе конкурентоспособных каталитических гиперциклов. Воспроизведение абиогенных условий, которые к ней привели – задача чрезвычайно нелегкая и еще очень далека от решения, хотя сегодня уже показана возможность синтеза целого класса биологически важных органических соединений с 80%-ым доминированием одного из энантиомеров. Очень важно, что один из применяемых при этом катализаторов – фотозависимый. Света в молекулярном облаке, где формируется описанный солитон, более, чем достаточно.
Как сформировалась клетка, результат третьей Великой Молекулярной Революции и единица сегодняшней самостоятельной жизни, – разговор особый. Так или иначе, но компартментализация молекулярных процессов, которую она обеспечивает, приводит к весьма серьезным селективным преимуществам – дискретности и недолговечности, в формате которых наиболее эффективны отбор (конкуренция) и кооперация – со специализацией отдельных элементов и последующей многоклеточностью. Однажды достигнутая, клеточная организация жизни быстро переиграла любую альтернативную и стала доминирующей. В этой книжке мы не будем говорить о происхождении клетки. Это происхождение – как и возникновение хиральной чистоты биологических молекул – было, по-видимому, неизбежным. Мы обсудим здесь предмет, на наш взгляд, гораздо более интересный, предмет, завораживающий своей красотой и своей регулярностью, предмет, сконструированный из реальных молекул, но так, что его свойства могут быть описаны в совершенно абстрактных терминах.
О второй Великой Молекулярной Революции (возникновении генетического кода), которая обеспечила колоссальные селективные преимущества обладателям операционной системой молекулярной памяти, не так легко сказать «однажды достигнутая». Возникновение хиральной чистоты – процесс практически одноактный – в том смысле, что она либо есть (и тогда жизнь оказывается возможной), либо ее нет. Возникновение компартментализации – в том же смысле – не имеет промежуточных этапов: она либо есть, либо ее нет. Существование какой бы то ни было клеточной стенки и ее дальнейшая эволюция – события принципиально одноплановые. Генетический же код – в том смысле, какой в это понятие вкладывают учебники – просто не мог возникнуть сразу, «однажды». То, что обычно называется кодом – это предмет договора, условность, вещь конвенциальная. В отношении генетического кода нет договаривающихся сторон, поэтому этот термин иногда характеризуется как метафора . Он должен быть совершенно естественным продуктом, предметом физикалистского подхода в рамках молекулярно-биологической аксиоматики. В то же время – и мы это увидим далее – его организация очевидно выходит за эти рамки. Кроме того, он относится к двадцати белокобразующим аминокислотам, и его возникновение должно было, таким образом, пройти, по крайней мере, двадцать шагов, каждый из которых должен был учитывать не только пройденный уже путь, но и каким-то образом сообразовываться с дальнейшими. Более того, совершенно неочевидна и химия этих процессов. Необсуждаемым в учебниках свойствам генетического кода и выводам, которые за ними могут стоять, и посвящена вторая часть этой книжки, для которой первая, заканчивающаяся следующей главой, – необходимое вступление).
.....................
Несколько слов о номере этой главы. Несмотря на обещание не касаться более ставших скучными рассуждений относительно числа 111 , помещаемых в конец очередной главы, Автор – с массой извинений – еще один раз напоминает о нем. В четырнадцатиричной системе счисления (таблица в Главе 1 [ II ]) этому числу соответствует информационная сигнатура 11114 . Почему мы опять о ней вспомнили – да еще в такой экзотической системе счисления – автор попытается пояснить позднее.
Глава G. Переход к биогенезу (IX)
Описывая молекулярные события пост-абиогенеза, которые привели к появлению примитивных биологических машин, профессор Марчелло Барбьери[47] начинает с возникновения простейших из них – тех, что обеспечивали соединение однотипных молекул в полимеры; он называет их связывающимимашинами , bondmakers . Не знаю, как поточнее перевести на русский этот термин, назову его, например, коннектором . Но не в том смысле, какой вкладывается в понятие связующее звено , а в том, каким обозначается инструмент для связи таких звеньев. Например, инструмент, с помощью которого две маленькие свинцовые «таблетки» сплющиваются в пломбу, зажимающую две веревочки, целость которых свидетельствует о сохранности опломбированного груза, – не помню, он, кажется, называется пломбир? Так что bondmaker можно перевести и смешным словом пломбир .
Некоторые из этих молекулярных машин связывали аминокислоты, другие – азотистые основания, третьи – сахара и т.д. Поскольку рибосомальные РНК – и даже их короткие фрагменты – способны в эксперименте способствовать формированию пептидных связей, первыми коннекторами могли быть именно молекулы РНК небольшого размера. Стоит помнить при этом два обстоятельства.
Во-первых, эти коннекторы работали как ко-факторы, то есть, как энзимы (или рибозимы , как их называют). Другими словами, одна и та же молекула рибозима могла использоваться многократно. В какой-то мере этот процесс удалось смоделировать Сиднею Фоксу[48], который соединил аминокислоты в короткие нерегулярные цепи, осуществивбезматричный синтез полипептидов; подобные полипептидные цепи были потом реально найдены, среди прочей простой органики, в метеоритном веществе.
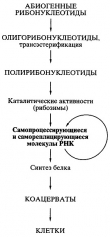
Во-вторых, все эти Великие Молекулярные Революции , Большие Скачки и тому подобное – описывают события тех лет весьма условно. Рибозим мог работать как коннектор для полимеризации, скажем, нуклеотидов. Но ведь он и сам был молекулой нуклеотидного полимера! И должен был – совершенно по другой схеме – без предсуществовавших коннекторов – собраться, случайно обладая пригодившейся позднее функцией. Событие, конечно, возможное, но еще раз показывающее весьма метафорический характер выражения Молекулярная Революция . Порядковые номера этих Революций и Скачков тоже не менее условны: всё происходило – в известном смысле – очень быстро и в общем плавильном котле, где уловить порядок событий было бы просто невозможно. РНК-мир, весьма вероятно, существовал какое-то время – до появления ДНК, – но и ему предшествовали масштабные события, о которых можно пока только гадать. Причем температура этого «котла» могла быть и низкой: многие рибозимы эффективно работают у точки замерзания воды – и даже ниже. Каким образом произошел сдвиг к миру РНК от абиогенно сформированных накануне каталитических гиперциклов, обладающих некоторыми свойствами живых систем? Как РНК стала участником таких самоподдерживающихся реакций, а затем и вовсе вытеснила конкурентов из биогенного мейнстрима, оставив появившимся много позднее, но совершенно очевидно в результате ее победы, исследователям только одни вопросы?
В 70-х годах ХХ века в клетках некоторых организмов были обнаружены ферменты белковой природы, которые включали в свой состав кроме белка ещё и молекулу РНК. Вначале считалось, что молекула РНК является в таких комплексах лишь вспомогательным элементом. Однако, вскоре было замечено, что даже после удаления белка из ферментативного комплекса оставшаяся РНК способна катализировать специфическую реакцию. Более того, даже искусственно синтезированная РНК, входящая в состав изучаемых ферментов, может самостоятельно катализировать эту реакцию. Молекулы РНК, способные к катализу, были названы рибозимами. За их открытие в 1989 году Томас Чек и Сидни Альтман были удостоены Нобелевской премии по химии. Были обнаружены молекулы РНК, способные нести генетическую информацию и одновременно катализировать химические реакции. РНК была объявлена родоначальницей доклеточной жизни.
Позднее было показано, что у всех организмов именно РНК, находящаяся в каталитическом центре рибосом, отвечает за главный этап в сборке белков – соединение аминокислот между собой. Открытие этого факта ещё более упрочило позиции сторонников РНК-мира. « Действительно, если спроецировать современную картину жизни на её возможное начало, разумно предположить, что рибосомы – структуры, специально существующие в клетке для дешифровки информации, содержащейся в нуклеиновых кислотах, и для производства белка, – возникли как комплексы РНК, способные к соединению аминокислот в одну цепочку. Так на основе мира РНК мог появиться мир белков ». Функции РНК весьма многообразны. Они не только катализируют химические реакции, но и защищают клетки растений и низших животных от вторжения вирусов. У высших животных такие «малые РНК» могут участвовать в регуляции считывания генной информации с хромосом. В 1989 году нобелевский лауреат по химии Уолтер Гилберт ввёл в оборот выражение мир РНК , имея в виду полноценный, самостоятельный и способный к эволюции мир доклеточной жизни.
Теория РНК-мира, однако, полна противоречий. Сложность искусственного синтеза олигонуклеотидов заставила Фреда Хойла, известного британского астрофизика и «друга парадоксов», заявить, что идея РНК-мира «столь же нелепа, как и предположение о возможности сборки Боинга 747 ураганом, пронёсшимся над мусорной свалкой». Остатки первых примитивных клеток обнаруживаются в слоях, относящихся к периоду 3,5-3,8 млрд лет тому назад. Предположение же, что жизнь не могла зародиться раньше, чем 4 млрд лет назад, не оставляло времени для развития доклеточного РНК-мира. С этим согласились и такие сторонники (и основатели) гипотезы РНК-мира, как Чек и Оргел. Кроме того, было показано, что однонитчатая ДНК может служить даже лучшим ферментом, чем РНК. При этом ДНК гораздо более устойчива во внешней среде, что даёт ей немалое преимущество. Еще один доклеточный короткоживущий мир? Еще одна гипотеза – того же типа? Но есть и другие, и их множество.
Многие аспекты проблемы (термодинамика, упорядочивание, фрактальность и линейность живых систем)– описаны, например, в упомянутой выше книге Эрика Галимова (тоже, кстати, начатой в свободное время , то есть на больничной койке, но имеющей, в отличие от этой, скорее, характер монографии) и в других, опубликованных в разных странах. Не будем излагать все, отметим любопытные. Одна из гипотез – гидратная , как назвали ее авторы[49] – В.Е. Островский и Е.А.Кадышевич – предполагает, что простейшие элементы живой материи многократно образовывались и, возможно, сегодня образуются в недрах Земли из метана (или другого углеводорода), селитры и фосфата в полостях газовых гидратов. Авторы называют ДНК и РНК простейшими формами доклеточной живой материи,а азотистые основания исахара, которые входят в состав нуклеиновых кислот, – простейшими элементами живой материи. В такой терминологии вирусы «и даже вироиды», как они пишут, следует рассматривать как живые субстанции . Гипотезу составляют три предположения, которые ее авторы формулируют следующим образом:
– В природе существуют трехмерные геометрические матрицы с полостями разных размеров, соответствующими размерам функциональных групп молекул ДНК и РНК, которые способны формировать сразу много молекул нуклеиновых кислот, сходных по строению, но различающихся по последовательности присоединения азотистых оснований. Матрицы довольно широко распространены в природе и строго детерминированы, но вместе с тем могут несколько видоизменяться в зависимости от окружающих условий. Глубоко под поверхностью земли условия гораздо стабильнее, чем на границе раздела фаз Земля/атмосфера, и это благоприятно для протекания длительных однонаправленных процессов.
– В ячейках матриц изначально присутствуют атомы, которые в результате химических реакций с веществами, диффундирующими внутрь матриц, способны образовывать молекулы ДНК и РНК. Поэтому достаточно лишь одного добавочного вещества для синтеза азотистых оснований, рибоз и аминокислот и еще одного вещества – для синтеза нуклеиновых кислот и белков.
– Монохиральность, присущая биологическим объектам, задана геометрией матриц, в которых образуются нуклеиновые кислоты.
Авторы исходят из того, что живая материя зародилась именно на нашей планете, а не в недрах Вселенной и что она возникла из неорганических и простейших органических веществ. Они полагают, что живая материя возникала многократно и, возможно, образуется и в наше время там, где есть подходящие условия и соседствуют необходимые исходные минеральные вещества. При этом они считают, что ДНК и РНК возникли одновременно и были локализованы в одних и тех же местах, причем таких мест было немало на протяжении истории Земли. Вначале возникли ДНК и РНК, затем белки, а не наоборот.
Как упоминалось, одни каталитические гиперциклы жестко конкурируют с другими, но для успешной конкуренции они должны обладать способностью воспроизводиться с некоторыми изменениями, закрепляемыми в дальнейшем. Другими словами, они должны обладать тем, что называется наследственностью и изменчивостью. Существуют ли такие гиперциклы? С определенными оговорками – как считает упоминавшийся уже Валентин Пармон – в качестве варианта такого автокаталитического цикла можно рассматривать знаменитую реакцию Бутлерова (описанную в 1864г).Эта реакция представляет собой синтез различных сахаров из формальдегида в слабощелочных водных растворах в присутствии ионов кальция. Реакция является автокаталитической, поскольку сахара одновременно выступают и в роли катализаторов. Большой набор синтезированных в ходе реакции сахаров – это не что иное, как прототип мутаций, которые определяют критические концентрации субстрата – формальдегида, при которых можно ожидать исчезновения автокатализаторов при понижении этой концентрации. В дальнейшем реакция будет идти, имея новые параметры. Другими словами, изменения («мутации») будут унаследованы новыми поколениями участников реакции.
Пармон полагает, что поскольку рибоза – это сахар, а фосфорные и азотные соединения, необходимые для построения нуклеотидов, присоединяются к ней без серьезных проблем и в дальнейшем формируют полимеры (с помощью коннекторов Барбьери), то именно сахара и есть основа всего живого. И именно молекулы на основе сахаров, а не нуклеотидов и аминокислот ответственны за биологическую память, то есть за отличие живого от неживого. И эти молекулы могли образоваться в ходе реакции Бутлерова.
Нельзя исключить, – говорит Пармон,– что реакция Бутлерова – не единственная автокаталитическая реакция, положившая начало естественному отбору и «жизни». Однако другие такие реакции пока не известны. Одним из очень привлекательных следствий описываемой гипотезы, которое отмечает ее автор, является то, что пребиотический бульон был, скорее всего, весьма разбавленным – только тогда начинаетсяэффективная конкуренция молекул автокатализаторов за субстрат. Кроме того, отмеченные выше «мутации» в реакции Бутлерова возникают весьма быстро – за считанные минуты. А это означает, что «первые прототипы живых объектов могли появиться буквально за миллионы или даже за сотни тысяч лет, а не за миллиарды – о чем и свидетельствует геология».
Не менее привлекательно выглядит предположение о гомохиральности биологических молекул – в рамках той же гипотезы: поскольку практически все сахараобладают свойством хиральности, первая же молекула автокатализатора (моносахарида), имевшая существенные «эволюционные» преимущества, быстро вытеснила остальные.
Пармон дает следующее (физико-химическое) определение сакраментального предмета, о котором мы здесь говорим: «жизнь – это фазово-обособленная форма существования функционирующих автокатализаторов, способных к химическим мутациям и претерпевших достаточно длительную эволюцию за счет естественного отбора». Однако, без информационной компоненты такое определение сразу же лишает смысла обсуждавшиеся выше вопросы о том, являются ли живыми вирусы (за пределами клетки-хозяина), споры бактерий, плазмиды или бумажные версии геномов живых существ. В то же время на вопрос, откуда берутся фазово-обособленные формы, у химиков есть довольно убедительный ответ: известно, что при каталитическом синтезенекоторых полимеров – например, полипропилена или полиэтилена – продукт формируется сразу в виде отдельной фазы -микрогранулы или глобулы, внутри которой работает катализатор, который и производитэти полимеры.
Если все происходило именно так, – заключает Пармон, – тогда РНК и ДНК образуются на любой планете, геологическая история которой сходна с историей Земли.
Отметим, что приведенная выше гипотеза объединяет, таким образом, две упомянутые Молекулярные Революции – возникновение хиральности и возникновение клеток. Поскольку возникновение генетического кода (вторая из трех Революций ) вероятно– и мы это увидим – выходит за пределы химической трактовки, о нем мы поговорим отдельно, а пока вернемся к первому Большому Скачку молекулярной эволюции Смита и Шатмари (происхождение генов). Следующим его этапом – после возникновения молекулярных коннекторов – стало формирование машин матричного копирования – copymakers , как их назвал Марчелло Барбьери, амплификаторов , как – тоже не слишком удачно – переведем на «русский» это слово мы. Копирование линейной матрицы – элементарный акт дупликации гена – первый шаг возникновения феномена наследственности. Если следующий Большой Скачок определяется как возникновение протеинов, то название первого – абсолютно неудачно. Гены, то есть информация для производства протеинов, не могут существовать отдельно от этих протеинов: информация термин не самодостаточный, а функциональный, предусматривающий определенную цель, самореализацию, прочтение. Два этих химически несравнимых мира – мир нуклеиновых кислот и мир протеинов – должны быть взаимно сопоставлены, чтобы один из них стал хранителем информации, а другой был организован в соответствии с этой информацией. Линейная запись информации, способная к матричному копированию (с некоторыми ошибками), идеально подходит для того, чтобы стать геном. Белковые молекулы, способные формировать разнообразнейшие трехмерные структуры, идеально подходят на роль ферментов (которыми в РНК-мире были куда менее эффективные рибозимы), а также других структур. Для сопоставления нуклеиновых белков и протеинов должны были возникнуть – и возникли – особые машины codemakers , в терминах Барбьери. Назовем их декодерами . Это слово подчеркивает не только простую причастность к чтению и реализации генетической информации, но и основную функцию этих молекул – ее дешифровку, то есть движение информации от гена, где она закодирована, к белку, который представляет расшифрованный текст. Что это за машины, и что это за феномен – генетический код, мы обсудим позднее. А пока ...
.....................
... а пока поясним символ этой главы, и причину его выбора. Дело просто в том, что в мире нуклеиновых кислот латинская буква G символизирует одно из четырех азотистых оснований – гуанин (мы так и будем писать ее далее – прописью и курсивом). Это самое «тяжелое» основание (округленная молекулярная масса – 151) с химической формулой:
Дублет GG триплетного генетического кода контролирует синтез самой «легкой» аминокислоты – глицина, трехбуквенный символ которой – Gly ( Гли – «по-русски»), а однобуквенный – а мы в дальнейшем будем использовать именно однобуквенные латинские символы (и будем писать их полужирным шрифтом в прописном варианте) – G . Ее округленная молекулярная масса – 75, а структурная химическая формула –
Наконец, если известную всем таблицу генетического кода представить «в плоском варианте (4×4)», то есть приняв во внимание только две первые кодирующие буквы и оставив, таким образом, только вертикальную (первые буквы кодонов) и горизонтальную (вторые буквы кодонов) координаты (выделены серым), а кодирущие буквы (азотистые основания) вдоль этих координат упорядочить по нарастанию молекулярных масс, то глицин G , кодируемый дублетом GG , займет шестнадцатую клетку (в правом нижнем углу таблицы):
Десятичное число 16 в системах счисления с основаниями, большими, чем 16, записывается символом G (который в данном случае является цифрой, а не буквой). Пронумеровав приведенную таблицу генетического кода в этих системах счисления построчно, получим:
Забавное тройное совпадение, не правда ли? Благодаря ему Автор и выбрал номер этой главы – выбор, конечно, произвольный. Но Бог не играет в кости , и совпадения, о которых пойдет речь далее, будут уже не так забавны. Более того, они вряд ли будут даже совпадениями. Замечу теперь, что практически все идеи, которые лежат в основе последующих рассуждений, содержатся в этом пояснении – явно или нет.
Часть вторая – Машина генетического кодирования
Глава G@C. Генетический код – явление «героя» (X)
События, связанные с эволюцией Вселенной и коротко описанные выше, привели, в конечном счете (а может быть, и « в том числе ») к возникновению жизни, центральным феноменом которой стало объединение мира нуклеиновых кислот и мира белков в единую автокаталитическую суперсистему, для чего потребовался и был доведен до необходимого состояния так называемый генетический код – связующее звено обоих миров. Генетический код – это набор инструкций для перевода нуклеотидной последовательности в полипептидную. Таким образом, сегодняшний код составляют два компонента. Первый – кодирующий — компонент – это четыре азотистых основания (или нуклеотида, когда они фосфорилированы и составляют цепи РНК или ДНК).